Persistance bactérienne. Croissance, persistance et résistance
Croissance, persistance et résistance
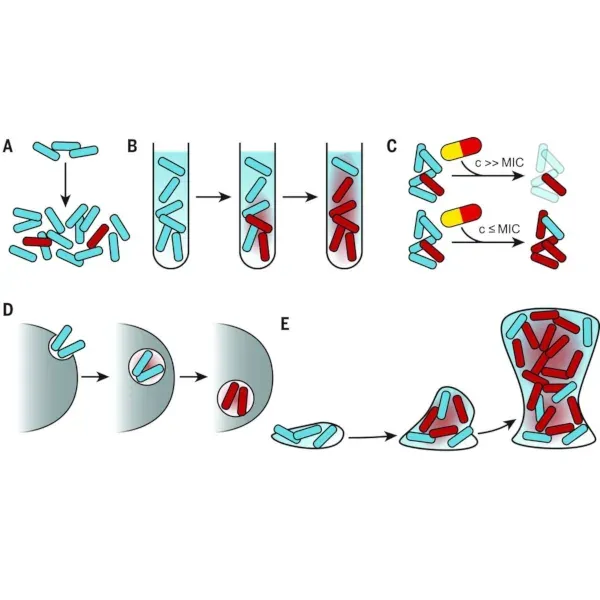
Les cellules bactériennes savent régler leur cycle de croissance en réponse aux changements des conditions ambiantes. Plusieurs mécanismes y concourent : l’état viable mais non cultivable (VBNC), la persistance (qui renvoie à une résistance aux antibiotiques par variants phénotypiques non héréditaires, via les systèmes toxine-antitoxine) et l’inhibition de croissance dépendante du contact. Ces mécanismes sont exposés ci-dessous.
La persistance bactérienne
Dans l’ensemble, l’ADN transmet dans le temps les caractères phénotypiques (l’apparence extérieure de l’organisme). Les caractères phénotypiques renvoient aux gènes exprimés chez cet organisme ; de nombreux gènes ne sont pas exprimés tout en étant présents. Les organismes présentent aussi des variations phénotypiques qui peuvent persister plus d’une génération sans aucune modification directe de leur ADN. Autrement dit, cette variation phénotypique n’est pas codée dans l’ADN : le micro-organisme garde la mémoire de son environnement passé. Cette faculté permet aux bactéries d’influencer les générations suivantes. Des populations bactériennes génétiquement identiques peuvent donc réagir différemment à un traitement antibiotique. La persistance reste mal comprise et fait intervenir plusieurs mécanismes qui n’ont été élucidés qu’en partie.
Plus récemment, des travaux ont permis d’élucider une voie de persistance. Rappelons que les bactéries persistantes, sous-population d’une espèce donnée, tolèrent différents types d’antibiotiques. Elles ont le même génome que leurs congénères non persistantes, mais sont entrées dans un état de dormance qui les rend résistantes à certains antibiotiques.
Un locus de persistance a été identifié chez E. coli. Ce locus d’ADN contient une région codant un système toxine-antitoxine (TA). Certaines séquences nucléotidiques TA codent une protéase Lon (Long Form Filament, enzyme qui clive les protéines) et une endonucléase d’ARNm (enzyme qui clive l’ARN, mRNase). Les antitoxines contrôlent l’activité des mRNases, lesquelles sont des substrats de Lon. On a observé que la suppression de Lon réduit la persistance et que sa surproduction augmente la proportion de bactéries persistantes, ce qui n’est pas le cas en l’absence des mRNases. Les mRNases codées par le locus TA sont activées dans une petite sous-population de bactéries en croissance, par la dégradation des antitoxines sous l’effet de Lon. On a également observé que l’activation des mRNases inhibe la traduction cellulaire globale, ce qui induit dormance et persistance. Nombre de bactéries pathogènes connues pour entrer en dormance possèdent beaucoup de gènes TA.
On a proposé que les gènes toxine-antitoxine (TA) régulent la croissance cellulaire en réponse au stress environnemental. Les gènes de cette région codante sont activés lors d’une carence et dans d’autres conditions qui inhibent la transcription et la traduction. Les toxines codées par les gènes TA bactériens sont des interférases d’ARNm (nucléases qui clivent l’ARNm). Ces interférases inhibent la synthèse protéique et arrêtent rapidement la croissance bactérienne. Il a été montré qu’elles provoquent un état bactériostatique facilement réversible par l’expression de l’antitoxine, elle aussi codée par les gènes TA. Un stress environnemental provoque donc l’activation de la toxine, qui interrompt rapidement la synthèse protéique jusqu’au retour de conditions meilleures. Comme les gènes TA sont dérépressés par la dégradation de l’antitoxine, la bactérie doit produire davantage d’antitoxine pour contrer l’activité de la toxine une fois adaptée au stress. Le retour à la normale après activation des interférases d’ARNm est également facilité par le système de contrôle qualité de l’ARNtm, qui recycle les ribosomes bloqués lors de la traduction des ARNm clivés par la toxine.
La persistance est un mécanisme de contrôle de la croissance par variation phénotypique chez les bactéries. Rappelons qu’elle n’est pas un caractère génétiquement héréditaire : la résistance aux antibiotiques due à la persistance relève d’un mécanisme tout autre que les formes héritées génétiquement. Les mécanismes de persistance ont été difficiles à étudier parce qu’ils ne sont pas héréditaires et se manifestent à basse fréquence. Une classe de cellules persistantes, dite de type I, a été étudiée. Leur apparition est liée au système TA et à l’expression des gènes HipA-HipB. On a observé qu’une mutation du gène hipA (7) multiplie par mille la fréquence des persistantes. Ces cellules sont dormantes, ne se divisent pas et apparaissent spontanément dans une population bactérienne. Un autre type de cellules persistantes, dit de type II, a été observé ; il se comporte différemment du type I : les cellules de type II continuent de croître lentement en présence d’ampicilline pendant quelques générations. On suggère que l’état des persistantes de type II pourrait être faiblement héréditaire ; ce serait alors médié par la méthylation de l’ADN, qui est héritable mais peut se perdre en quelques générations bactériennes.
Ces mécanismes sont encore mal compris et l’on ignore si l’activation du système TA est la conséquence ou la cause de la persistance. Certains chercheurs suggèrent que la persistance pourrait résulter du vieillissement cellulaire. D’autres estiment que les persistantes pourraient être gouvernées par un interrupteur bistable doublement négatif : une augmentation du rapport toxine/antitoxine surviendrait dans une cellule du fait d’une dégradation stochastiquement plus forte de l’antitoxine, entraînant une baisse de la traduction dans cette cellule, puis une baisse supplémentaire, la toxine étant plus stable que l’antitoxine.
Des phénomènes épigénétiques ont été mis en évidence, dont les états VBNC et de persistance, par lesquels les bactéries créent une diversité phénotypique. En tant que mécanismes de régulation de la croissance non héréditaires, ils restent mal compris. Les bactéries n’en sont pas moins capables de régler leur propre croissance en fonction des changements de leur environnement. L’épigénétique recouvre la modification chimique de gènes déterminés ou des protéines qui leur sont associées, modification qui change la façon dont un gène est exprimé et utilisé par la cellule. Elle met souvent en jeu des interactions entre gènes et produits de gènes, d’où résulte le phénotype d’un organisme.
Cette page dans d'autres langues : English · Deutsch · Español · Italiano